RNA bevat een extra zuurstofatoom op de 2′-positie en gebruikt uracil (U) in plaats van thymine (T) dat DNA bevat.
Baseparen in RNA
RNA basepaart voornamelijk A–U en G–C, maar kan ook G–U-wobble-baseparen vormen met twee waterstofbruggen en afwijkende geometrie.
Structuurelementen van RNA
RNA bevat stammen (gepaarde nucleotiden), lussen (ongepaarde nucleotiden) en haarspeldstructuren (teruggevouwen stammen met lussen).
Belang van RNA-vouwing
RNA-vouwing is cruciaal voor de functie van rRNA en tRNA, omdat het specifieke driedimensionale structuren vormt.
Functie van RNA-polymerase tijdens transcriptie
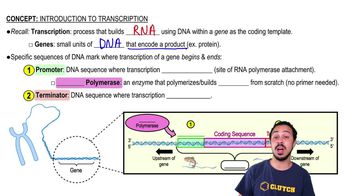
RNA-polymerase synthetiseert RNA in 5′→3′ richting, gebruikt één DNA-streng als template, en opent lokaal de DNA-helix.
Wat is een promotor?
Een promotor is een DNA-sequentie waar transcriptie begint en waar RNA-polymerase wordt gericht.
Rol van sigma in bacteriële transcriptie
Sigma is een transcriptiefactor die RNA-polymerase naar de promotor brengt en helpt bij het openen van DNA.
Abortieve initiatie
Fase waarin RNA-polymerase korte, instabiele RNA-fragmenten loslaat voordat een stabiel transcript van ongeveer 10 nucleotiden ontstaat.
Waarom is transcriptie langzamer dan DNA-replicatie?
Omdat RNA-polymerase zelf de DNA-helix opent zonder aparte helicase, verloopt transcriptie met ongeveer 50 nucleotiden per seconde, langzamer dan DNA-replicatie.
Mechanisme van terminatie in bacteriën
Een GC-rijke palindromische sequentie vormt een haarspeld, gevolgd door een U-rijke regio die een zwakke RNA-DNA-hybride vormt, waardoor RNA loslaat.
Drie RNA-polymerasen in eukaryoten en hun producten
RNA-polymerase I maakt rRNA, II maakt mRNA, en III maakt kleine RNA's zoals tRNA en snRNA.
Wat is de TATA-box?
Een AT-rijke eukaryote promotorsequentie ongeveer 30 nucleotiden vóór het transcriptiestartpunt (+1), herkend door TBP.
Functies van TFIIH
TFIIH opent het DNA met helicase-activiteit en fosforyleert het CTD van RNA-polymerase II met kinase-activiteit.
Rol van het CTD van RNA-polymerase II
Het CTD bevat serines en threonines die gefosforyleerd worden om bindingsplaatsen te creëren voor factoren bij initiatie, elongatie, capping, splicing en polyadenylering.
Vorming van het eukaryote transcriptiecomplex
Volgorde: TFIID/TBP bindt TATA-box, TFIIA/TFIIB stabiliseren, RNA-polymerase II wordt gerekruteerd, TFIIH opent DNA, CTD wordt gefosforyleerd, transcriptie start.
Drie belangrijkste vormen van mRNA-processing
5′-capping, splicing (verwijderen van intronen), en 3′-polyadenylering.
Functies van 5′-capping
Beschermt mRNA tegen afbraak, dient als exportsignaal uit de kern, en is nodig voor efficiënte translatie.
Proces van splicing
Intronen worden verwijderd via twee transesterificatiestappen waarbij een lariat met een branch point adenine ontstaat, waarna exonen worden verbonden.
Wat is een lariat en branch point?
Een lariat is een vertakte lus gevormd tijdens splicing; het branch point is een specifieke adenine in het intron die deze lus vormt.
Rol van snRNA's en snRNP's bij splicing
snRNA's basenparen met spliceplaatsen en samen met eiwitten vormen ze snRNP's die het spliceosoom naar de juiste spliceplaatsen brengen.
Wat is alternatieve splicing?
Proces waarbij verschillende combinaties van exonen uit hetzelfde gen worden samengevoegd, wat leidt tot verschillende mRNA's en eiwitvarianten.
Functie van 3′-polyadenylering
Toevoegen van een poly-A-staart aan het 3′-uiteinde van mRNA voor bescherming, export en efficiënte translatie.
Verschil in transcriptieterminatie tussen bacteriën en eukaryoten
Bacteriën gebruiken een GC-rijke haarspeld en zwakke U-rijke hybride; eukaryoten knippen bij het polyadenyleringssignaal gevolgd door exonuclease-afbraak.
Belangrijkste verschillen tussen bacterieel en eukaryoot mRNA
Bacterieel mRNA heeft geen 5′-cap, geen intronen en meestal geen poly-A-staart; eukaryoot mRNA heeft deze wel.
 뒤로
 07:44